Buscar este blog

Mostrando entradas con la etiqueta Biología Molecular. Mostrar todas las entradas

sábado, 19 de mayo de 2012

Mycoplasma mycoides


Click aquí para una versión de alta resolución del dibujo

Mycoplasma mycoides

Acuarela de David S. Goodsell, 2011

En colaboración con Field Test Independent Film Corps, he creado una pintura de una célula entera de Mycoplasma mycoides. La célula mostrada aquí es de aproximadamente 250 nanómetros de diámetro, que está en el extremo pequeño de la gama de tamaños observables. En este trabajo eh tratado de incluir todas las macromoléculas en los lugares y concentraciones razonables, y con las formas y tamaños reales. Las moléculas pequeñas como azúcares, ATP y agua no se muestran.


Síntesis de proteínas (etiquetas en negro)

1. ADN
2. ADN polimerasa
3.  P
roteína de unión al ADN monocatenario (protege las poirciones de la cadena sencilla durante la replicación) 
4. ARN polimerasa
5. ARN mensajero
6. ribosoma
7. ARN de transferencia (en rosa) y el factor de elongación Tu (en azul)
8. factor de elongación Tu y Ts
9. factor de elongación G
10. aminoacil-tRNA sintetasas
11. topoisomerasas
12. Sistema Rec para la reparación del ADN: a) RecA, b) RecBC
13. chaperonina GroEL (ayuda al plegamiento de 
nuevas proteínas)
14. proteasoma ClpA (destruye las proteínas viejas) 


Enzimas para la producción de energía (etiquetas en rojo)

15. enzimas glucolíticas
16. complejo piruvato deshidrogenasa


Proteínas de membrana (etiquetas en azul) 

17. ATPsintasa
18. proteínas secretoras
19. bomba de sodio
20. transportador de zinc
21. transportador de magnesio
22. Transportador ABC (
diferentes transportadores ABC transportan diferentes tipos de  moléculas ABC -ABC es la abreviatura de "ATP-binding cassette"-)
23. transportador de magnesio
24. lypoglycan (cadenas 
largas de hidratos de carbono conectadas a los lípidos en la membrana)

Nota. No sé cual sea la traducción al español de lypoglycan, por lo que decidí dejarlo tal cual aparece en la fuente original (en ingles).


David S. Goodsell, el autor de este trabajo, comparte con el público este material y permite compartirlo, a cambio sólo pide que se le de reconocimiento con algo como: "Ilustración de David S. Goodsell, the Scripps Research Institute," y de ser posible, él apreciaría una copia de las publicaciones donde sea utilizado su trabajo.

Para más información sobre este trabajo u otros realizados por David S. Goodsell , dirigirse a mgl.scripps.edu o escribir al correo goodsell@scripps.edu

viernes, 3 de febrero de 2012

Anticuerpos terapéuticos

Molécula de inmunoglobulina G (IgG1). Crédito de la imagen: Visual Science
Gaceta: Biomédicas | UNAM*


Anabel Loza y Walter García
Unidad de Estudios Clínicos de Productos Biotecnológicos
Instituto Bioclon S.A. de C.V.

Los anticuerpos para uso terapéutico han atraído la atención de científicos, médicos y bioquímicos en el área de las biociencias. El primer premio Nobel otorgado (1890) fue para Emil von Behring, por el trabajo en el cual reportó el descubrimiento de los anticuerpos. Desde entonces se han otorgado quince premios Nobel a quienes han hecho aportes significativos en el ámbito de la inmunología y siete de estos fueron investigaciones relacionadas con anticuerpos, moléculas a las que desde un inicio les fue reconocida su potencialidad para ser usadas en aplicaciones diagnósticas y terapéuticas

Los anticuerpos policlonales fueron los protagonistas en la época de la serología y la seroterapia. Los anticuerpos monoclonales de primera generación se convirtieron en las herramientas principales de técnicas analíticas como los radio-inmunoensayos, los ensayos inmuno-enzimáticos y la citometría de flujo.

Avances importantes en el área de la biología molecular y el desarrollo en técnicas de ADN recombinante han hecho posible la creación de anticuerpos recombinantes, también llamados anticuerpos monoclonales de segunda generación, los cuales han tenido un mayor impacto para la biomedicina.

Actualmente, la incorporación de las técnicas de biología molecular, ingeniería genética y proteica han permitido ampliar el horizonte de la generación de anticuerpos monoclonales y sus usos; la producción de anticuerpos monoclonales para uso en humanos es una de las áreas de mayor crecimiento en la industria biotecnológica y farmacéutica; en el mercado se encuentran aproximadamente veintinueve anticuerpos monoclonales aprobados para su aplicación terapéutica. Ejemplo de ello son los fragmentos F(ab’)2 de inmunoglobulina G (IgG) hiperinmune antialacrán de caballo, de reciente aprobación por la Food and Drug Administration (FDA).

La IgG es una globulina formada por dos pares de cadenas polipeptídicas, cuya función principal es reconocer y unirse a moléculas extrañas, denominadas antígenos. Desde el punto de vista funcional, la IgG, está formada por dos regiones o fracciones: La fracción Fab (fragmento de unión al antígeno, “antigen binding” o variable) y la fracción Fc (fragmento cristalizable o constante). Dos fragmentos Fab’ unidos por un puente de disulfuro constituyen el denominado fragmento F(ab´)2. Este tiene dos sitios de unión específicos contra el veneno de Centruroides sp.

Para que el veneno pueda ejercer su efecto tóxico necesita llegar al órgano blanco de su acción nociva. Una vez en el órgano, debe acoplarse al receptor o sustrato específico donde ejerce su efecto tóxico. El Faboterápico impide que el sitio activo del veneno interactúe con su receptor, y por lo tanto evita que se desencadenen los mecanismos fisiopatológicos de la intoxicación. Si el veneno ya se unió a su receptor, se requieren fragmentos F(ab´)2 que tengan mayor afinidad por el veneno que la afinidad del veneno por su receptor para revertir la intoxicación.

El impacto tecnológico, científico y medico-terapéutico, ha servido de base para el mejoramiento de aplicaciones tecnológicas a la solución de problemas que enfrentan las sociedades.

El desarrollo de los anticuerpos monoclonales y la producción de vacunas, entre otras muchas aplicaciones y usos, ha dado lugar a la aprobación de comercializados para el beneficio de la sociedad mundial.


Referencias

  • Anticuerpos monoclonales terapéuticos. Informe de Vigilancia Tecnológica. Genoma España; 2007 p.10, 24, 32, y 43.
  • Krifi M.H, Savin S, Debray M, Bon C, Ayeb M.E, Choumet V. Pharmacokinetic studies of scorpion venom before and after antivenom immunotherapy. Toxicon, 2005;45:187–198.
  • Curry SC, Vance MV, Ryan PJ, Kunkel DB, Northey WT. Envenomation by the scorpion Centruroides sculpturatus, J Toxicol Clin Toxicol, 1983-1984;21(4-5):417-49.


* Gaceta: Biomédicas. Órgano Informativo del Instituto de Investigaciones Biomédicas de la UNAM. Diciembre de 2011. Año 16. Número 12. ISSN 1607-6788

viernes, 20 de enero de 2012

Apoptosis: El suicidio celular que nos mantiene con vida

 Apoptosis: El suicidio celular que nos mantiene con vida (I)
La apoptosis en sus distintas fases
MedTempus.com

El suicidio es algo extremadamente cotidiano en nuestro interior. Cada día, en cualquiera de nosotros, se produce el suicidio de alrededor de 10 mil millones de células. Esta elevada cantidad de muertes intencionadas no se debe, ni mucho menos, a una “conducta depresiva” de nuestras células, como si hubieran perdido la ilusión por vivir. Nada más lejos. La apoptosis o muerte celular programada (actualmente, hay cierta discusión sobre esta terminología) es un acto radical de altruismo, un sacrificio extremo por el bien común del resto de células y del que depende nuestra propia supervivencia.

De la misma manera que para que una especie se perpetúe van naciendo nuevos individuos y muriendo los más viejos y/o enfermos, en nuestro cuerpo las células más viejas y enfermas deciden quitarse voluntariamente de en medio para que la vida del organismo persista.


Así se suicida una célula

La apoptosis es un fenómeno celular regulado con extremo detalle. Todo comienza con una determinada señal, que puede aparecer en el interior de la célula o en el exterior. Aunque estas señales son muy diversas vamos a mencionar dos situaciones muy características:

1) Una célula, tras haber vivido plenamente durante unos meses, ha acumulado tal cantidad de mutaciones en su ADN (causados por rayos ultravioletas, por ejemplo) que no es capaz de repararlos por sí misma. Ante tal circunstancia, la célula prefiere cortar por lo sano antes que funcionar mal y causar problemas a sus compañeras y al organismo en el que se encuentra y, así, decide entrar en apoptosis.

2) Una célula está enfermita debido a la infección por un determinado virus. Una célula Natural Killer (literalmente, “asesina natural”) que anda haciendo su ronda de vigilancia por la zona se adhiere a la célula y se conecta con sus receptores, reconociendo el estado de infección de la célula e induciendo el comienzo de la apoptosis. Básicamente, “convence” a la célula de que se suicide, cosa no muy difícil, ya que muchas células tienen como lema “antes muerta que infectada”.

Cuando una célula inicia el proceso de apoptosis lo primero que hace es apartarse del resto de sus compañeras. Tras aislarse de las demás, la célula comienza a encogerse poco a poco y a formar pequeñas esferas o vesículas debido a la destrucción de su esqueleto (el citoesqueleto). Tanto los “órganos” de la célula (los orgánulos) y su ADN van empaquetándose progresivamente al tiempo que la célula se encoge.

Apoptosis2 Apoptosis: El suicidio celular que nos mantiene con vida (I)
Izquierda: Glóbulo blanco Derecha: Glóbulo blanco en apoptosis

En la siguiente fase, el ADN se termina fraccionando al igual que la membrana celular, dando lugar a una gran cantidad de pequeñas vesículas llamadas cuerpos apoptóticos que contienen todas las entrañas de la célula. Estas vesículas serán engullidas por otras células mediante la fagocitosis para limpiar el estropicio y, más tarde, para hacer una práctica labor de reciclaje: Los componentes de la célula suicida serán reutilizados por sus compañeras.

El suicidio celular se caracteriza por ser un fenómeno silencioso y limpio en el que se trata de alterar lo mínimo posible a las otras células de alrededor. Si una célula, por la razón que sea, expulsase su contenido al exterior provocaría daño al resto de células e inflamación por la liberación de enzimas dañinas. Por eso, en la apoptosis todo el contenido de las células queda perfectamente empaquetado y englobado en las vesículas, para que no salgan al exterior y puedan fagocitarse fácilmente y reaprovechar el contenido.

A continuación, podemos observar de forma simplificada el complejo proceso molecular que ocurre durante la apoptosis y cómo la célula va encogiéndose y dividiéndose en pequeñas vesículas:


domingo, 18 de diciembre de 2011

Algunos datos sobre el VIH

La Infección por VIH y el SIDA


Por: Torres Escobar Indiana* y Martínez Fernández Rodolfo**


Modelo de plástico del VIH fabricado
La infección con cualquiera de los virus de inmunodeficiencia humana resulta en una perdida progresiva de las funciones del sistema inmune, determinando finalmente la aparición el conjunto de patologías que constituyen el Síndrome de Inmunodeficiencia Adquirida. La progresión hacia el SIDA es variable, dependiendo tanto de factores en el huésped como de factores virales. El Síndrome de Inmunodeficiencia Humana es la última etapa de la infección por el Virus de la Inmunodeficiencia Humana (VIH), largo y complejo proceso resultante de la interacción dinámica entre el virus con el sistema inmune que resulta de la elevada y constante producción de nuevos viriones que ocasionan la destrucción progresiva de linfocitos T de tipo CD4, determinando la historia natural de la enfermedad que sin el tratamiento adecuado terminará inevitablemente con la vida del huésped.


VIH 1 y VIH 2

Familia: Retroviridae
Género: Lentivirus

El VIH 1 es responsable del mayor número de casos infectados en el mundo, en tanto el VIH 2 se encuentra circunscrito a África occidental y, más recientemente a la India.
Basados en la total secuenciación genómica viral, actualmente hay tres grupos principales de VIH 1 llamados M, N y O (tabla 1), habiéndose identificado ocho grupos y ningún subgrupo del VIH 2.


Los subtipos virales presentan una distribución geográfica determinada. El subtipo A y D son fundamentales en África Central, el B en -
Norte América y Europa, el C en África del Sur e India, F en Brasil y Rumanía, G en Rusia, H en Taiwán, J en Zaire y K en Camerún.


Patogenia

La transmisión del VIH es el resultado de una interacción entre el virus y los receptores de la superficie celular que finalmente permiten la penetración  hacia la célula de la nucleocápside viral a través de la membrana celular. Para el ingreso a la célula huésped, además del receptro CD4, es necesaria la existencia de distintos correceptores (CCR5, CXCR4, CCR3, CCR2B, CCR1 y CCR4). Diversos estudios han confirmado el papel de CCR5 como el correceptor más importante en cepas con tropismo por los macrófagos y el CXR4 como el correceptor de las cepas con tropismo de las células T. Estos dos distintos tipos d virus son referidos ahora como virus R5 y X4. Existen cepas virales con tropismo dual (VIH R5X4). El VIH R5 es el transmitido con mayor frecuencia por vía sexual y predomina durante los primeros años de la infección.

Aunque el VIH puede infectar diferentes células del cuerpo (linfocitos, células dencríticas, glía, precursores de médula ósea y células enterocromáfines del intestino) sus blancos principales son el linfocito y los macrófagos. El contacto del virus, el receptor y el (los) correceptor(es) desarrollan una serie de cambios en las glicoproteínas de la superficie que produce la fusión de las membranas viral y celular permitiendo la entrada del virión. Una vez ingresado comienza la replicación de los virus (ver video), comenzando por la transcripción reversa formando ADN complementario del ARN viral.
A partir de su ingreso y durante la fase primaria de la infección el virus busca los tejidos linfoides e infecta las células T CD4.


A continuación las etapas de la enfermedad desde la infección por VIH hasta el desarrollo del Síndrome de Inmunodeficiencia Humana (SIDA):


1. Transmisión viral: la forma de transmisión va a determinar la velocidad de progresión. Así, para quienes se infectaron por transfusión, el desarrollo del SIDA es de alrededor de 7 años, y va de 8 a 12 por transmisión sexual.
2. Infección primaria: asociada a la replicación viral inicial presenta de manera variable fiebre, adenomegalias, faringitis, erupción maculopapular en cara y tronco, pudiendo también presentarse ulceraciones mucosas, mialgias y artralgias.
3. Seroconversión: periodo en que se desarrolla y es posible detectar anticuerpos contra el virus. La mayoría de las personas pueden presentarlo los primeros 6 meses, generalmente de 3 a 12 semanas. Se conoce como "periodo ventana" aquel en que la serología es negativa estando la persona infectada.
4. Periodo asintomático: de acuerdo con la cepa viral adquirida y a la respuesta inmune encontrada, este periodo conocido también como "setpoint" se da después de 6 meses de adquirida la infección. Su duración es variable produciéndose una constante actividad viral y un equilibrio entre la destrucción y producción celular. La carga viral y la cantidad de linfocitos T+ CD4 encontrados tendrán relación con la progresión al SIDA. Puede ser asintomática o presentarse linfadenopatía generalizada. Sin tratamiento, del 20 al 30% de los casos desarrollarán condiciones definitorias de SIDA dentro de los 18 a 24 meses siguientes.
5. SIDA: como resultado de la inmunodeficiencia adquirida por la destrucción de linfocitos CD4 se presentan tanto infecciones oportunistas como neoplasias secundarias. El deterioro inmunológico y las enfermedades asociadas incluyen los casos con recuentos de CD4 menores de 200 cel/ml (aunque la persona se encuentre asintomática) y aquellos con enfermedades definitorias de SIDA, aunque el recuento de CD4 sea mayor a 500 cel/ml. Dividiremos este periodo en dos:
        a. Infección asintomática temprana: con manifestaciones no definitorias de SIDA, se da ya el inicio de la inmunodeficiencia.
       b. Infección avanzada: con recuentos de CD4 menores a 50 cel/ml presentan las patologías consideradas como definitorias con una sobrevida que en general no es mayor a 18 meses.


Tanto la medición de la cantidad de RNA del VIH o carga viral como el recuento de células CD4+ son utilizados como marcadores de la progresión de la infección.
Se entiende como progresión, aunque en cada individuo se presenta de manera variable, el que el paciente presente un incremento de la morbilidad ante la presencia de una mayor carga viral y una disminución de los linfocitos CD4. Si bien ambos marcadores se utilizan, la carga viral desde su aprobación en 1996 se convirtió en una prueba de laboratorio muy utilizada para determinar la progresión de la infección, ya que ésta aumenta mucho antes de que los linfocitos T CD4 disminuyan, dando evidencia de una replicación viral activa.
Ambas medidas son utilizadas como guías para la toma de decisiones terapéuticas haciendo posible individualizar el tratamiento y determinando con precisión cuándo es el mejor momento para el inicio o el cambio de los antirretrovirales.


Las técnicas de amplificación de ácidos nucleicos pueden detectar hasta 20 copias/ml en la versión denominada ultrasensible (Amplicor).
La cuenta absoluta de linfocitos CD4 se basa más comúnmente en la prueba hecha a través del citómetro de flujo, donde se obtiene el porcentaje de células CD4. Además, se han definido porcentajes equivalentes de linfocitos CD4 a los valores absolutos en los puntos e corte clínicamente relevantes.


*Torres Escobar Indiana
Maestría en Epidemiología, Maestría en Ciencias, Especialista en VIH-SIDA.
Profesora-Investigadora Titular "A" Tiempo Completo de FMBUAP.
Responsable Servicio Especializado  de Atención al VIH/SIDA.
Integrante experta del Panel Asesor de las Américas en Salud Reproductiva de la OMS, y del Grupo Poblano de Trabajo en VIH/SIDA.
Miembro de la Asociación Mexicana de Infectología y Microbiología Clínica A.C., la International Association of Physicians in AIDS Care y de la International  AIDS Society.


**Martínez Fernández Rodolfo
Médico Cirujano, Especialista en Cirugía General.
Sub Especialidad en Cirugía Digestiva.
Maestría en Ciencias Médicas e Investigación Clínica.
Profesos-Investigador y Secretario de Investigación y Estudios de Posgrado de la BUAP.
Integrante del padrón de Investigadores de la BUAP.
Certificado Consejo Mexicano de Cirugía: Folio 32596.
Membresías: International Collage of Surgeons, Sociedad de Gastroenterología de Puebla, Sociedad Mexicana de Gastroenterología, Academia Nacional Mexicana de Bioética.


Fuente: Virología Básica y Clínica. Nidia Gary Salazar, Rosendo Briones Rojos y Gloria León Tello (coordinadores). Editorial: BUAP, pp. 249-251.


Replicación del VIH

La replicación del VIH-1 es un proceso de múltiples etapas. Cada paso es crucial para el éxito de la replicación. Y es, por consiguiente, un blanco potencial para los fármacos antirretrovirales.


Fuente del video: Boehringer Ingelheim.com
Subtitulado por: Dra. Shora (Esther Samper). Página Web: medtempus.com

miércoles, 9 de noviembre de 2011

El lenguaje de las células y los modelos de canales iónicos


Ir a inicio de: Elementos
Ángel A. Islas                                                         Descargar versión PDF
Eduardo Salinas Stefanon


“Me inclino a creer que la vida tal como se nos presenta debe ser una función de la asimetría del universo o de las consecuencias que ésta implica”. Louis Pasteur. [1]


La segunda ley de la termodinámica dicta que todo sistema en el universo tiende al equilibrio en el cual la temperatura, la presión y el potencial químico tienden a ser uniformes; sin embargo, para toda célula que conforma un tejido, es vital mantener una concentración desigual de substancias en su interior y en el exterior. Específicamente, la desigualdad de cargas eléctricas a través de la membrana de una célula permite a esta establecer un no equilibrio dinámico que oscila alrededor de un estado estable desigual el cual, mediante una sofisticada maquinaria molecular delicadamente acoplada, es capaz de reaccionar apropiadamente a una serie de variaciones azarosas para regresar a tal estado estable.

Las bases experimentales y teóricas de dicha oscilación eléctrica en las células excitables fueron descritas por primera vez por Hodgkin y Huxley en 1952; más tarde, el desarrollo del entendimiento de procesos termodinámicos irreversibles y las valiosas aportaciones de Turing (sobre patrones espaciales en sistemas químicos), Lotka y Volterra (sobre oscilaciones ecológicas predador-presa) y Balescu (sobre cinéticas no lineares en oscilaciones de sistemas químicos abiertos), permitieron a Ilya Prigogine, premio Nobel de química en 1977, describir la autoorganización temporal que este tipo de comportamientos originan. [2 ]

En términos generales, un sistema abierto –como la célula– que intercambia materia y energía con su entorno, frecuentemente opera lejos del equilibrio y eventualmente alcanzará un nuevo estado estable. A consecuencia de procesos de retroalimentación su cinética es de naturaleza no-linear y eventualmente generará propiedades emergentes de autoorganización constituyendo lo que Prigogine llama una estructura disipativa. [2]

En el caso de las células excitables, al estado estable o de reposo lo caracteriza una asimetría en la distribución de cargas, ya que en el interior de la célula predomina una carga eléctrica negativa con respecto al exterior celular, lo que se conoce como potencial de membrana o de reposo. Las variaciones en este potencial eléctrico por medio del intercambio de partículas inorgánicas con carga constituyen la manera a través de la cual las células despliegan su capacidad de autoorganización temporal. Por medio de este comportamiento dinámico regenerativo, lejano al equilibrio, la célula censa el ambiente, recibe y transmite información codificada. Este fenómeno es de fundamental importancia ya que el funcionamiento de todo ser vivo depende de la capacidad con la que las células que lo componen se comuniquen.

Figura 1. Poro del canal de sodio en representación de listón (la cual
muestra la disposición regular de algunos de los átomos que la
componen, i.e. estructura secundaria). Un ión de sodio (Na+) pierde
su corona de hidratación (moléculas de H2O) al aproximarse al
vestíbulo externo del canal, comenzando su trayectoria al interior celular.
La secuencia de eventos moleculares por los cuales el potencial de membrana se incrementa rápidamente (despolarización), y disminuye nuevamente (repolarización), hasta alcanzar su estado estable inicial, sigue una trayectoria estereotípica y se conoce como potencial de acción. El desencadenamiento y el acople temporal de este fenómeno dependen de proteínas altamente especializadas y selectivas las cuales permiten el paso de iones positivos y negativos a través de la membrana de la célula en respuesta a cambios físicos y químicos. Estas macromoléculas son llamadas canales iónicos. 


LOS CANALES IÓNICOS: MÁQUINAS DE LENGUAJE CELULAR

A diferencia de otras proteínas acarreadoras de moléculas como las bombas y transportadores secundarios (e.g. de nutrientes), que precisan de un gasto de energía metabólica (transporte activo), los canales iónicos se valen del gradiente electroquímico para transportar iones; es decir, la fuerza impulsora que dirige el flujo iónico tiende a igualar las concentraciones y cargas en ambos compartimentos, interior y exterior celular, lo que se denomina transporte pasivo; este es mucho más rápido, pues miles de iones son transportados en milésimas de segundos; importantemente, no precisa de un gasto extra de energía: en principio, la segunda ley de la termodinámica le basta.

La célula, a lo largo de la evolución de la vida, ha generado mecanismos de retroalimentación (e.g. repolarización) situando al sistema en condiciones de no equilibrio, el cual, como indica Prigogine, crea “correlaciones de largo alcance” [2] por medio de las cuales la célula coordina su funcionamiento interno y su comunicación con otras células en un tejido.
Para tal efecto entra primero en juego un factor fundamental; la composición y estructura de los canales le confieren dos facultades primordiales: selectividad y la regulación de su actividad. La selectividad refiere al hecho de que los canales son más permeables a un solo tipo de ión, siendo los más importantes el potasio, el sodio, el calcio (con cargas positivas) y el cloro (con carga negativa). Los canales pueden existir en un estado abierto o cerrado y las transiciones entre estos estados se encuentran reguladas ya sea por ligandos, es decir, otras moléculas que al unirse a ellos abren o cierran el canal, o por voltaje, cuando los canales abren o cierran en respuesta a diferentes potenciales eléctricos a través de la membrana en la que se encuentran insertos.
La primera fase ascendente del mecanismo por el cual las células establecen comunicación es llamada despolarización. En ella los canales de sodio dependientes de voltaje desempeñan un papel esencial, siendo los responsables de la generación y propagación de potenciales de acción en neuronas, células musculares y neuroendócrinas [3] (Figura 1). 
El estudio de su estructura y función es de gran importancia biológica y médica, ya que la expresión y/o actividad anormal de estos canales han sido identificadas como un factor determinante en un sinnúmero de enfermedades llamadas canalopatías, que incluyen arritmias cardiacas, epilepsia, dolor neuropático e inflamatorio, parálisis muscular, entre otros.[4]
Se estima que un 13.4% de los medicamentos actuales ejercen su acción terapéutica sobre un canal iónico, haciéndolos el segundo mayor blanco terapéutico molecular (después de los receptores acoplados a proteínas G).[5]


Figura 2. Superficie Electrostática del poro del canal de sodio. El potencial
eléctrico 3D de una proteína está determinado por la carga en su conjunto de
cada uno de los aminoácidos que la componen. Las cargas negativas en rojo y
las positivas en azul. Las cargas próximas al eje del poro son predominantemente
negativas por lo que atraen a los iones de sodio (Na+) cuya carga el de +1.
EXPERIMENTOS VIRTUALES

El diseño de fármacos y el estudio de la relación entre su estructura y sus propiedades biológicas data del siglo XIX, destacando la aportación de John Langley, Paul Ehrlich y Alfred Clark, responsables del desarrollo del concepto de receptor, el cual se define como la macromolécula blanco sobre la cual el fármaco (o droga) ejerce su acción. 
Sin embargo no fue hasta los años 50’s del siglo XX, que Hansch propone aplicar cálculos y estadística para establecer relaciones cuantitativas entre la estructura y la actividad de moléculas biológicamente activas. Más tarde, con el advenimiento de nuevas tecnologías como las gráficas por computadora en los 80’s y 90’s surge el modelaje molecular.[6]
El modelaje molecular consiste en un conjunto de métodos computacionales que además de ser empleados para describir y analizar sistemas y fenómenos naturales a escala atómica, son aplicados en el campo de la farmacología, en el descubrimiento y optimización de nuevas moléculas (o ligandos) con afinidad a un blanco biológico (o receptor) sobre el cual ejerzan un efecto terapéutico. Dentro de estos métodos, el cribado virtual (detección de ligandos a partir del receptor), depende de la disponibilidad de información estructural del blanco biológico, la cual puede ser determinada experimentalmente o derivada computacionalmente.[7] 

Este tipo de experimentación virtual, es decir, llevada a cabo por computadora, se denomina in silico. Aunque el desarrollo de estos experimentos teóricos es mecanicista y está arraigado intrínsecamente a una visión reduccionista y determinista de los sistemas vivos, existen diversas ventajas frente a métodos tradicionales, por ejemplo, la reducción en el número de moléculas a ser sintetizadas o probadas, la agilización de la experimentación a través de la predicción de la mayoría de propiedades fisicoquímicas (Figura 2) y farmacéuticas de cualquier molécula con tan solo contar con su fórmula, y la capacidad masiva de procesamiento de información, lo que se traduce en la reducción de la experimentación en animales y de consumo de recursos de laboratorio en general.


LA ESTRUCTURA DETERMINA LA FUNCIÓN

Como se ha mencionado anteriormente, los canales iónicos constituyen blancos terapéuticos importantes, componen el 1.5% del genoma humano y se calcula que las ventas mundiales de medicamentos que actúan sobre estas proteínas están sobre los 12 billones de dólares.[5] 

No obstante, la mayoría de estos medicamentos han sido descubiertos mediante métodos tradicionales empleando animales o tejidos sin conocimiento previo de su blanco molecular.[5] 

A la luz del desarrollo tecnológico y del avance de la biología molecular y el entendimiento de procesos fisiopatológicos, es imprescindible conocer a detalle, en primera instancia, la actividad biológica y el funcionamiento normal de los canales iónicos, y en segundo, su farmacología, es decir, cómo modifican su actividad los medicamentos y drogas tanto en procesos patológicos como en organismos sanos. Sin embargo, para todo lo anterior es necesario disponer de información confiable acerca de su estructura y su actividad.

Como la mayoría de canales iónicos, los canales de sodio dependientes de voltaje son complejos proteicos formados por una subunidad (α) que al atravesar la membrana de la célula forma un poro, y las subunidades (ß) accesorias que modifican la actividad del canal. Importantemente, su secuencia (i.e. las biomoléculas llamadas aminoácidos que la componen), varía según el tipo de célula en la que se encuentren. 

Así, por ejemplo, la actividad moduladora que ejerce la subunidad ß1 en el canal es significativa en el sistema nervioso y en el músculo esquelético, pero no en el corazón.[3] 

Se conoce que la mutación de uno solo de los cerca de 2000 aminoácidos que componen la subunidad α es causa de enfermedades tales como la miotonía, en la que una mutación puntual (el cambio de un aminoácido por otro en la secuencia, i.e. V445M) del canal de sodio de músculo esquelético produce un desorden muscular en el cual al paciente se le dificulta relajar sus músculos después de flexionarlos.[8] Igualmente, en la insensibilidad al dolor congénita (CIP) se conocen varias mutaciones “sin sentido” (e.g. R277X, Y328X, W897X) sobre la secuencia del canal de sodio del sistema nervioso periférico, que producen en el individuo la incapacidad de percibir los estímulos dolorosos.[9]

En ambas patologías, un cambio estructural ha alterado la actividad del canal de sodio: se ha modificado uno o más parámetros en la cinética de conducción de cargas positivas (iones sodio) al interior celular, lo cual altera el potencial de acción y, por ende, la comunicación entre células. 

En el primer caso, la mutación V445M incrementa la corriente de sodio, el canal permanece más tiempo activo o abierto y se prolonga la despolarización en el potencial de acción y, por tanto, se retrasa la relajación del músculo después de una contracción. 

En el segundo caso las mutaciones “sin sentido” producen el truncamiento de la proteína que forma el canal, volviéndolo no funcional. Al registrarse un estímulo doloroso, la información sobre este estímulo precisa de codificarse y transmitirse en forma de potenciales de acción a través del sistema nervioso periférico al cerebro, pero ya que el canal de sodio no es funcional, los potenciales de acción no pueden iniciarse y la información sobre el estímulo doloroso nunca llega al cerebro.
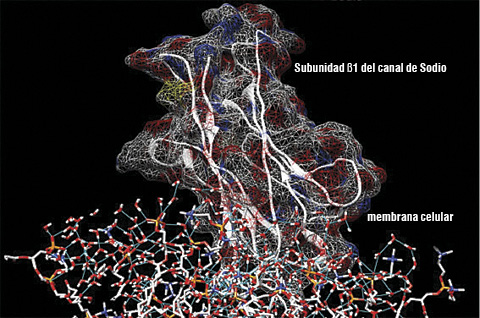

Figura 3. La porción extracelular del modelo de la subunidad ß1 del canal de
sodio inserto en un modelo de la membrana celular. La representación superficial
transparente de los volúmenes atómicos de ß1 permite visualizar también su
estructura secundaria mediante su representación de listón. El código estándar de
 colores para cada átomo en un modelo molecular es: rojo.-oxígeno, azul.-nitrógeno,
naranja.-fósforo, gris.-carbono, blanco.-hidrógeno.
ONTOGENIA DE UN MODELO

Pero no todas las mutaciones puntuales modifican la actividad del canal tan significativamente, por lo que se pretende identificar a los aminoácidos que participan principalmente en los eventos moleculares que subyacen a los procesos fisiológicos.

En el Laboratorio de Biofísica Cardiaca del Instituto de Fisiología de la BUAP pretendemos identificar a los aminoácidos involucrados en la asociación molecular que determina la modulación que ejerce la subunidad ß1 del canal de sodio (Figura 3). 

Las proteínas α y ß1 provienen de dos genes diferentes que a lo largo de la evolución han establecido una asociación funcional. 
Para tal efecto se ha desarrollado un modelo 3D a escala atómica de la subunidad ß1, por medio de un método in silico conocido como modelaje molecular por homología. 

Esto consiste en: a) identificar una proteína estrechamente relacionada por evolución divergente de una proteína ancestral común con la proteína blanco a modelar, la cual haya sido determinada experimentalmente (molde). b) alinear ambas secuencias para c) mutar computacionalmente cada aminoácido de la proteína blanco en el lugar correspondiente de la estructura resuelta experimentalmente. 

Por último, el modelo se refina y evalúa de acuerdo a las leyes fisicoquímicas que determinan la geometría molecular. Una vez que se cuenta con información estructural confiable sobre el canal, con principios fisicoquímicos y resultados experimentales publicados, se establecen hipótesis sobre las posibles interacciones moleculares y cambios conformacionales que se llevan a cabo durante el mecanismo de compuerta del canal.

Aunque existen otros métodos indirectos para medir la actividad del canal (como los ensayos de unión, de flujo iónico, las sondas fluorescentes, entre otros), el estándar de oro para estudiar la actividad y farmacología de un canal son los registros electrofisiológicos, [10] los cuales miden en tiempo real la actividad del canal en función de la corriente eléctrica macroscópica (producto de la actividad de una población de canales) que se genera al variar experimentalmente el voltaje a través del tiempo. 

Mediante diferentes protocolos de estimulación y en diversos tipos de preparaciones se obtienen parámetros estadísticos que describen la cinética del canal, sus tiempos y voltajes de activación, inactivación y recuperación.

Dicha información retroalimenta los modelos moleculares 3D a partir de los cuales se formulan nuevas hipótesis cualitativas sobre el comportamiento de los átomos del canal, causa última subyacente a los fenómenos macroscópicos observables. 

Los modelos constituyen “hipótesis atómicas tridimensionales” asociadas a información experimental y cuyo comportamiento y evolución depende de aproximaciones estadísticas de las leyes fisicoquímicas de la naturaleza en un ambiente virtual en el cual se puede explorar una infinidad de posibilidades. 

Por lo tanto, estos modelos a su vez contribuyen a dar una explicación coherente a los resultados empíricos y guían el diseño de nuevos experimentos que puedan contestar preguntas de relevancia fisiológica e importancia médica. Incluso bajo el espíritu newtoniano de un universo mecánico, resultaría terriblemente reduccionista e ingenuo dar a esta etérea imagen de canales iónicos, por elaborada y metódica que haya sido su creación, la calidad de causa última de un fenómeno biológico. 

Pero bien es cierto que la delicada y extraordinaria comunicación celular que garantiza la vida de toda especie sobre la Tierra depende de un lenguaje que, en esencia, es una oscilación coordinada de cargas eléctricas, lejana al equilibrio termodinámico y fuertemente determinada por la estructura atómica de los canales por los cuales fluyen. 

Este es, al menos, un mejor modelo sobre la manera en la cual las células, las unidades fundamentales de la vida, transmiten información e interactúan coordinadamente entre sí para conformar el conjunto de ultraestructuras funcionales que constituyen los organismos. Un modelo falible y limitado al fin.

Sin embargo, en palabras del físico americano Henry A. Bent: “Un modelo debe ser erróneo hasta cierto grado, si no sería la cosa misma que representa. El truco está en ver en qué es correcto”.[11]


REFERENCIAS

1 L'Univers, disait-t-il un jour, est un ensemble dissymétrique. Je suis porté à croire que la vie, telle qu'elle se manifeste à nous, doit être fonction de la dissymétrie de l'Univers ou des conséquences qu'elle entraîne. Works 1, Comptes Rendus de l'Académie des Sciences (1874).
2 Goldbetter A. Biological Rythms as Temporal Dissipative Structures. Special Volume in Memory of Ilya Prigogine. Advances in Chemical Physics, 135. John Wiley & Sons, Inc (2007).
3 Catterall WA. From ionic currents to molecular mechanism: the structure and function of voltage-gated sodium channels. Neuron, 26 (2000) 13-25.
4 Brackenbury WJ and Isom LL. Voltage-gated Na+ channels: Potential for ß subunits as therapeutic targets. Expert Opinion on Therapeutic Targets 12 (2008) 1191-1203.
5 Clare J J. Targeting ion channels for drug discovery. Discovery Medicine 53 (2010).
6 Overington JP, Al-Lazikani B and Hopkins AL. How many drug targets are there? Nat Rev Drug Discov 5 (2006) 993-996.
7 Ekins S, Mestres J and Testa B. In silico pharmacology for drug discovery: applications to targets and beyond. Br J Pharmacol. 152 (2007) 21-37.
8 Takahashi MP and Cannon SC. Enhanced Slow Inactivation by v445m: A Sodium Channel Mutation Associated with Myotonia. Biophysical Journal 76 (1999) 861-868.
9 Lampert A, O'Reilly AO, Reeh P and Leffler A. Sodium channelopathies and pain. Pflugers Arch. 460 (2010) 249-63.
10 Zheng W and Kiss L. Screening Technologies for Ion Channel Targets in Drug Discovery. American Pharmaceutical Review, Ion Channels.
11 Höltje et al. Molecular Modeling: Basic Principles and Applications. Wiley vch, Weinheim, Germany (2003).

Ángel A. Islas
angelislas@gmail.com
Eduardo Salinas Stefanon
esalinass@gmail.com
Instituto de Fisiología BUAP Puebla, México.

martes, 25 de octubre de 2011

Las ribozimas, moléculas terapéuticas en experimentación


Guillermo Aquino Jarquin

El dogma central de la biología molecular y el conocimiento de los flujos de información genética, desde el ADN hasta las proteínas, planteó el gran dilema de quién fue primero: ¿el huevo o la gallina? O lo que es lo mismo, ¿el ADN o las proteínas?

En un principio, no era posible pensar en un mundo de ácido desoxirribonucleico (ADN) sin proteínas, así como tampoco imaginar proteínas sin ADN; de modo que la respuesta al problema se encontraba en el ácido ribonucleico (ARN); es decir, el ADN contiene el código genético de las células, mientras que el ARN copia este código y lo pasa a las proteínas (enzimas) que, a su vez, son responsables de las reacciones celulares. Pero este ARN –particularmente, el ARN mensajero (ARNm)– debe sufrir algunas modificaciones antes de ser utilizado como molécula informativa para construir las proteínas.

La respuesta a una gran disyuntiva 

Fig.1 Clic en la imagen para ampliar
La razón es que el ADN contiene unas regiones llamadasintrones –que no contienen información para construir las proteínas–, las cuales están intercaladas en los fragmentos que contienen la información necesaria (exones). Durante el proceso de maduración de los ARNm, los intrones son cortados, además de ser eliminados y los exones se vuelven a unir hasta conformar una molécula con sentido; es decir, una secuencia de ARN capaz de generar una proteína funcional. Como cualquier reacción que tiene lugar en la célula, este proceso de maduración de las moléculas de ARN requiere la acción de las enzimas. Pero, en 1982, cuando Thomas Robert Cech, bioquímico y biólogo molecular estadounidense, estaba estudiando el proceso de maduración de un ARN en un organismo unicelular llamado Tetrahymena thermophila, descubrió –con sorpresa– que cuando colocaba una molécula de ARN mensajero no procesada en un tubo de ensayo, en ausencia de enzimas y de energia adicional, ésta era capaz de comenzar su proceso de maduración. Cech llegó a la conclusión de que el ARN se podía autoprocesar y se comportaba como una enzima, pues había catalizado la reacción por sí mismo (figura 1). Esta forma de un ARN con función enzimática fue denominada por Cech: ribozima.

Los descubrimientos de este investigador causaron escepticismo, puesto que él no consideraba uno de los principios de la biología molecular, según el cual sólo las enzimas actúan como catalizadores en las reacciones, con lo cual estaba cambiando el dogma de que todas las enzimas eran proteínas.

Fig.2 Clic en la imagen para ampliar
Cuando en 1983, el químico estadounidense de origen canadiense, Sidney Altman anunció unos descubrimientos similares, los científicos se dieron cuenta de que el ARN podía actuar como una enzima, además de mantener su papel como molécula necesaria para la formación de proteínas. Sin duda, el hallazgo de las ribozimas fortaleció la hipótesis del mundo de ARN que intenta descifrar el misterio del origen de la vida, lo que ha conducido a la idea de que esta génesis pudo deberse a la aparición de moléculas de ARN, del tipo ribozimas, capaces de contener la información genética y al mismo tiempo de actuar como catalizadoras, una –facultad, hasta entonces, considerada propia de las proteínas–. De esta manera, el mundo del ARN ofrece la respuesta a la gran disyuntiva de el huevo o la gallina, definiendo que una simple molécula no sólo es un depósito estático de la información genética, sino además funciona como un catalizador, que a su vez codifica para los catalizadores más modernos: las proteínas, las cuales pudieron haber evolucionado después. Actualmente, además de esta actividad de auto-corte, se ha observado algo muy interesante: que las ribozimas pueden reconocer otros ARN y cortarlos de forma específica (figura 2).

La importancia de las ribozimas

Fig.3 Clic en la imagen para ampliar
Desde el descubrimiento de las primeras moléculas de ARN con actividad catalítica, aparecieron en la naturaleza diversos procesos catalizados por los ARN, particularmente en virus, bacterias y plantas. Hoy en día se conocen al menos siete ribozimas naturales. Los ARN catalíticos más pequeños como las ribozimas cabeza de martillo (hammerhead) y la ribozima de tipo pasador (hairpin) son los más estudiados (figura 3). El reconocimiento de las ribozimas por su ARN blanco (aquel que se desea procesar) se da mediante interacciones específicas entre las bases nitrogenadas (A,G,C,T) de la ribozima y el blanco. El corte se realiza en los grupos fosfatos. En el ARN, los grupos fosfato son aquellos que conectan una ribosa (el azúcar presente en el ARN) con otra, de manera que al romper estos enlaces se interrumpen las largas cadenas que constituyen la estructura del ARN.

El potencial terapéutico de la ribozimas 

Fig.4 Clic en la imagen para ampliar
Debido a su capacidad de corte, estas enzimas de ARN se consideran como buenos candidatos para el desarrollo de nuevas alternativas terapéuticas, útiles para el tratamiento de enfermedades contra las cuales en la actualidad no se cuenta con una terapia eficaz, lo que incluye enfermedades tanto de origen viral como genético. Para ello, una de las estrategias para conseguir la desactivación específica de la expresión génica más atractiva –un proceso altamente específico en el cual un gen se enciende en un momento determinado y comienza la producción de su proteína– se realiza mediante el empleo de ácidos nucleicos catalíticos, como las ribozimas (figura 4). El uso de ribozimas como agentes terapéuticos, tiene una ventaja añadida y es que, a diferencia de otros fármacos sumamente agresivos y carentes de especificidad celular, las ribozimas tienen una gran especificidad porque se unen sólo a la secuencia de ARN sobre la cual se dirigen, sin la posibilidad de alterar otros blancos celulares. Con base en esto, actualmente se usan ribozimas para cortar especialmente diversos ARN; con lo cual se logra, por ejemplo:
  • Evitar la entrada del Virus de Inmunodeficiencia Humana tipo I (VIH-I) a las células inmunitarias.
  • Bloquear la infección por virus de hepatitis B y de hepatitis C.
  • Tratar cánceres de mama y colorrectal.
La aplicación de ribozimas pequeñas como la ribozima hairpin, ha tenido considerable interés para la terapia génica, la cual ha sido utilizada como poderosa herramienta para el apagado de genes.*

En el Laboratorio de Terapia Génica, dirigido por el Doctor Luis Marat Alvarez Salas, del Departamento de Genética y Biología Molecular, del Centro de Investigación y de Estudios Avanzados (CINVESTAV), estamos utilizando este tipo de ribozimas como modelo para el desarrollo de ARN terapéuticos contra el cáncer cervical, el tipo de cáncer más común en mujeres mexicanas y que es responsable de la muerte de 12 mujeres diariamente. Una de las aproximaciones experimentales que hemos seguido ha sido la construcción de una ribozima hairpin R434 (figura 3) en un ambiente artificial (in vitro), que causa la destrucción del ARNm de los genes E6 y E7, del Virus del Papiloma Humano tipo 16 (VPH-16), el principal agente causante del cáncer cervico-uterino que, además, impide tanto el crecimiento de las células inmortalizadas (células que crecen indefinidamente) en presencia de este virus, como el crecimiento de tumores cervicales. Esta tecnología ha sido patentada en colaboración con el Dr. Joseph A. DiPaolo del Instituto Nacional de Salud (NIH), de los Estados Unidos, y se espera su evaluación en el ámbito clínico en nuestro país.

Lo anterior ha sido desarrollado como una estrategia adicional para el tratamiento de esta patología. A pesar de que existe una vacuna comercial contra el VPH-16, su distribución y aplicación en mujeres mexicanas se ve muy lejana, principalmente por el alto costo de la vacuna. Por otro lado, su efectividad radica en la prevención de la infección por el VPH-16 y no en el tratamiento del cáncer cervico-uterino; se trata de una vacuna preventiva y no curativa.

Es indiscutible que, en esta etapa, el compromiso de nuestro equipo de trabajo es consolidar el sistema de tratamiento, mediante el impulso de nuestras investigaciones a escala molecular, con especial énfasis en las ribozimas hairpin, ya que éstas han sido ampliamente estudiadas y se conoce su uso potencial en la terapia génica, al igual que su papel como herramienta terapéutica para este tipo de cáncer en particular.


* La terapia génica es un procedimiento que implica reemplazar, manipular o suplementar los genes no funcionales con genes que sí funcionan, para poder tratar así enfermedades.

Guillermo Aquino Jarquin es biólogo experimental por la Universidad Autónoma Metropolitana, unidad Iztapalapa y maestro en genética y biología molecular por el CINVESTAV, donde está por obtener el doctorado en ciencias. Actualmente, labora en el Laboratorio de Terapia Génica del Departamento de Genética y Biología Molecular, abocado a la evaluación del potencial de las ribozimas como un ácido nucleico terapéutico contra el cáncer cervicouterino.


Referencias

1. Cech T. R. “The chemistry of self-splicing RNA and RNA enzymes”. Science (1987), Jun 19;236 (4808):1532-9.

2. Alvarez Salas L. M. et.al. “Inhibition of HPV-16 E6/E7 immortalization of normal keratinocytes by hairpin ribozymes”. Proc. Natl. Acad. Sci. U S A. 1998 Feb 3;95(3):1189-94.

3. Barroso del Jesús, A. y Berzal-Herranz, A. “En busca de nuevos agentes antivirales: Ribozimas y estrategias de aplicación”. (2001), Virología, 8: 47-67.