viernes, 2 de diciembre de 2011


miércoles, 9 de noviembre de 2011
El lenguaje de las células y los modelos de canales iónicos

Ángel A. Islas Descargar versión PDF
Eduardo Salinas Stefanon
“Me inclino a creer que la vida tal como se nos presenta debe ser una función de la asimetría del universo o de las consecuencias que ésta implica”. Louis Pasteur. [1]
La segunda ley de la termodinámica dicta que todo sistema en el universo tiende al equilibrio en el cual la temperatura, la presión y el potencial químico tienden a ser uniformes; sin embargo, para toda célula que conforma un tejido, es vital mantener una concentración desigual de substancias en su interior y en el exterior. Específicamente, la desigualdad de cargas eléctricas a través de la membrana de una célula permite a esta establecer un no equilibrio dinámico que oscila alrededor de un estado estable desigual el cual, mediante una sofisticada maquinaria molecular delicadamente acoplada, es capaz de reaccionar apropiadamente a una serie de variaciones azarosas para regresar a tal estado estable.
Las bases experimentales y teóricas de dicha oscilación eléctrica en las células excitables fueron descritas por primera vez por Hodgkin y Huxley en 1952; más tarde, el desarrollo del entendimiento de procesos termodinámicos irreversibles y las valiosas aportaciones de Turing (sobre patrones espaciales en sistemas químicos), Lotka y Volterra (sobre oscilaciones ecológicas predador-presa) y Balescu (sobre cinéticas no lineares en oscilaciones de sistemas químicos abiertos), permitieron a Ilya Prigogine, premio Nobel de química en 1977, describir la autoorganización temporal que este tipo de comportamientos originan. [2 ]
En términos generales, un sistema abierto –como la célula– que intercambia materia y energía con su entorno, frecuentemente opera lejos del equilibrio y eventualmente alcanzará un nuevo estado estable. A consecuencia de procesos de retroalimentación su cinética es de naturaleza no-linear y eventualmente generará propiedades emergentes de autoorganización constituyendo lo que Prigogine llama una estructura disipativa. [2]
En el caso de las células excitables, al estado estable o de reposo lo caracteriza una asimetría en la distribución de cargas, ya que en el interior de la célula predomina una carga eléctrica negativa con respecto al exterior celular, lo que se conoce como potencial de membrana o de reposo. Las variaciones en este potencial eléctrico por medio del intercambio de partículas inorgánicas con carga constituyen la manera a través de la cual las células despliegan su capacidad de autoorganización temporal. Por medio de este comportamiento dinámico regenerativo, lejano al equilibrio, la célula censa el ambiente, recibe y transmite información codificada. Este fenómeno es de fundamental importancia ya que el funcionamiento de todo ser vivo depende de la capacidad con la que las células que lo componen se comuniquen.
 |
| Figura 1. Poro del canal de sodio en representación de listón (la cual muestra la disposición regular de algunos de los átomos que la componen, i.e. estructura secundaria). Un ión de sodio (Na+) pierde su corona de hidratación (moléculas de H2O) al aproximarse al vestíbulo externo del canal, comenzando su trayectoria al interior celular. |
La secuencia de eventos moleculares por los cuales el potencial de membrana se incrementa rápidamente (despolarización), y disminuye nuevamente (repolarización), hasta alcanzar su estado estable inicial, sigue una trayectoria estereotípica y se conoce como potencial de acción. El desencadenamiento y el acople temporal de este fenómeno dependen de proteínas altamente especializadas y selectivas las cuales permiten el paso de iones positivos y negativos a través de la membrana de la célula en respuesta a cambios físicos y químicos. Estas macromoléculas son llamadas canales iónicos.
LOS CANALES IÓNICOS: MÁQUINAS DE LENGUAJE CELULAR
A diferencia de otras proteínas acarreadoras de moléculas como las bombas y transportadores secundarios (e.g. de nutrientes), que precisan de un gasto de energía metabólica (transporte activo), los canales iónicos se valen del gradiente electroquímico para transportar iones; es decir, la fuerza impulsora que dirige el flujo iónico tiende a igualar las concentraciones y cargas en ambos compartimentos, interior y exterior celular, lo que se denomina transporte pasivo; este es mucho más rápido, pues miles de iones son transportados en milésimas de segundos; importantemente, no precisa de un gasto extra de energía: en principio, la segunda ley de la termodinámica le basta.
La célula, a lo largo de la evolución de la vida, ha generado mecanismos de retroalimentación (e.g. repolarización) situando al sistema en condiciones de no equilibrio, el cual, como indica Prigogine, crea “correlaciones de largo alcance” [2] por medio de las cuales la célula coordina su funcionamiento interno y su comunicación con otras células en un tejido.
Para tal efecto entra primero en juego un factor fundamental; la composición y estructura de los canales le confieren dos facultades primordiales: selectividad y la regulación de su actividad. La selectividad refiere al hecho de que los canales son más permeables a un solo tipo de ión, siendo los más importantes el potasio, el sodio, el calcio (con cargas positivas) y el cloro (con carga negativa). Los canales pueden existir en un estado abierto o cerrado y las transiciones entre estos estados se encuentran reguladas ya sea por ligandos, es decir, otras moléculas que al unirse a ellos abren o cierran el canal, o por voltaje, cuando los canales abren o cierran en respuesta a diferentes potenciales eléctricos a través de la membrana en la que se encuentran insertos.
La primera fase ascendente del mecanismo por el cual las células establecen comunicación es llamada despolarización. En ella los canales de sodio dependientes de voltaje desempeñan un papel esencial, siendo los responsables de la generación y propagación de potenciales de acción en neuronas, células musculares y neuroendócrinas [3] (Figura 1).
El estudio de su estructura y función es de gran importancia biológica y médica, ya que la expresión y/o actividad anormal de estos canales han sido identificadas como un factor determinante en un sinnúmero de enfermedades llamadas canalopatías, que incluyen arritmias cardiacas, epilepsia, dolor neuropático e inflamatorio, parálisis muscular, entre otros.[4]
Se estima que un 13.4% de los medicamentos actuales ejercen su acción terapéutica sobre un canal iónico, haciéndolos el segundo mayor blanco terapéutico molecular (después de los receptores acoplados a proteínas G).[5]
 |
Figura 2. Superficie Electrostática del poro del canal de sodio. El potencial
eléctrico 3D de una proteína está determinado por la carga en su conjunto de
cada uno de los aminoácidos que la componen. Las cargas negativas en rojo y
las positivas en azul. Las cargas próximas al eje del poro son predominantemente
negativas por lo que atraen a los iones de sodio (Na+) cuya carga el de +1.
|
EXPERIMENTOS VIRTUALES
El diseño de fármacos y el estudio de la relación entre su estructura y sus propiedades biológicas data del siglo XIX, destacando la aportación de John Langley, Paul Ehrlich y Alfred Clark, responsables del desarrollo del concepto de receptor, el cual se define como la macromolécula blanco sobre la cual el fármaco (o droga) ejerce su acción.
Sin embargo no fue hasta los años 50’s del siglo XX, que Hansch propone aplicar cálculos y estadística para establecer relaciones cuantitativas entre la estructura y la actividad de moléculas biológicamente activas. Más tarde, con el advenimiento de nuevas tecnologías como las gráficas por computadora en los 80’s y 90’s surge el modelaje molecular.[6]
El modelaje molecular consiste en un conjunto de métodos computacionales que además de ser empleados para describir y analizar sistemas y fenómenos naturales a escala atómica, son aplicados en el campo de la farmacología, en el descubrimiento y optimización de nuevas moléculas (o ligandos) con afinidad a un blanco biológico (o receptor) sobre el cual ejerzan un efecto terapéutico. Dentro de estos métodos, el cribado virtual (detección de ligandos a partir del receptor), depende de la disponibilidad de información estructural del blanco biológico, la cual puede ser determinada experimentalmente o derivada computacionalmente.[7]
Este tipo de experimentación virtual, es decir, llevada a cabo por computadora, se denomina in silico. Aunque el desarrollo de estos experimentos teóricos es mecanicista y está arraigado intrínsecamente a una visión reduccionista y determinista de los sistemas vivos, existen diversas ventajas frente a métodos tradicionales, por ejemplo, la reducción en el número de moléculas a ser sintetizadas o probadas, la agilización de la experimentación a través de la predicción de la mayoría de propiedades fisicoquímicas (Figura 2) y farmacéuticas de cualquier molécula con tan solo contar con su fórmula, y la capacidad masiva de procesamiento de información, lo que se traduce en la reducción de la experimentación en animales y de consumo de recursos de laboratorio en general.
LA ESTRUCTURA DETERMINA LA FUNCIÓN
Como se ha mencionado anteriormente, los canales iónicos constituyen blancos terapéuticos importantes, componen el 1.5% del genoma humano y se calcula que las ventas mundiales de medicamentos que actúan sobre estas proteínas están sobre los 12 billones de dólares.[5]
No obstante, la mayoría de estos medicamentos han sido descubiertos mediante métodos tradicionales empleando animales o tejidos sin conocimiento previo de su blanco molecular.[5]
A la luz del desarrollo tecnológico y del avance de la biología molecular y el entendimiento de procesos fisiopatológicos, es imprescindible conocer a detalle, en primera instancia, la actividad biológica y el funcionamiento normal de los canales iónicos, y en segundo, su farmacología, es decir, cómo modifican su actividad los medicamentos y drogas tanto en procesos patológicos como en organismos sanos. Sin embargo, para todo lo anterior es necesario disponer de información confiable acerca de su estructura y su actividad.
Como la mayoría de canales iónicos, los canales de sodio dependientes de voltaje son complejos proteicos formados por una subunidad (α) que al atravesar la membrana de la célula forma un poro, y las subunidades (ß) accesorias que modifican la actividad del canal. Importantemente, su secuencia (i.e. las biomoléculas llamadas aminoácidos que la componen), varía según el tipo de célula en la que se encuentren.
Así, por ejemplo, la actividad moduladora que ejerce la subunidad ß1 en el canal es significativa en el sistema nervioso y en el músculo esquelético, pero no en el corazón.[3]
Se conoce que la mutación de uno solo de los cerca de 2000 aminoácidos que componen la subunidad α es causa de enfermedades tales como la miotonía, en la que una mutación puntual (el cambio de un aminoácido por otro en la secuencia, i.e. V445M) del canal de sodio de músculo esquelético produce un desorden muscular en el cual al paciente se le dificulta relajar sus músculos después de flexionarlos.[8] Igualmente, en la insensibilidad al dolor congénita (CIP) se conocen varias mutaciones “sin sentido” (e.g. R277X, Y328X, W897X) sobre la secuencia del canal de sodio del sistema nervioso periférico, que producen en el individuo la incapacidad de percibir los estímulos dolorosos.[9]
En ambas patologías, un cambio estructural ha alterado la actividad del canal de sodio: se ha modificado uno o más parámetros en la cinética de conducción de cargas positivas (iones sodio) al interior celular, lo cual altera el potencial de acción y, por ende, la comunicación entre células.
En el primer caso, la mutación V445M incrementa la corriente de sodio, el canal permanece más tiempo activo o abierto y se prolonga la despolarización en el potencial de acción y, por tanto, se retrasa la relajación del músculo después de una contracción.
En el segundo caso las mutaciones “sin sentido” producen el truncamiento de la proteína que forma el canal, volviéndolo no funcional. Al registrarse un estímulo doloroso, la información sobre este estímulo precisa de codificarse y transmitirse en forma de potenciales de acción a través del sistema nervioso periférico al cerebro, pero ya que el canal de sodio no es funcional, los potenciales de acción no pueden iniciarse y la información sobre el estímulo doloroso nunca llega al cerebro.
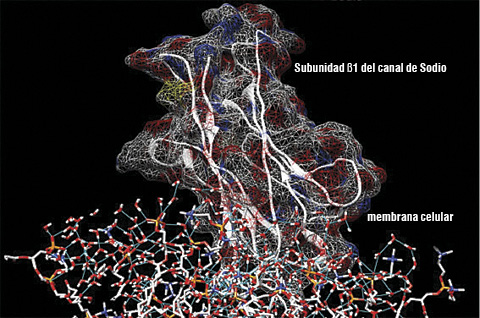 |
Figura 3. La porción extracelular del modelo de la subunidad ß1 del canal de
sodio inserto en un modelo de la membrana celular. La representación superficial
transparente de los volúmenes atómicos de ß1 permite visualizar también su
estructura secundaria mediante su representación de listón. El código estándar de
colores para cada átomo en un modelo molecular es: rojo.-oxígeno, azul.-nitrógeno,
naranja.-fósforo, gris.-carbono, blanco.-hidrógeno.
|
ONTOGENIA DE UN MODELO
Pero no todas las mutaciones puntuales modifican la actividad del canal tan significativamente, por lo que se pretende identificar a los aminoácidos que participan principalmente en los eventos moleculares que subyacen a los procesos fisiológicos.
En el Laboratorio de Biofísica Cardiaca del Instituto de Fisiología de la BUAP pretendemos identificar a los aminoácidos involucrados en la asociación molecular que determina la modulación que ejerce la subunidad ß1 del canal de sodio (Figura 3).
Las proteínas α y ß1 provienen de dos genes diferentes que a lo largo de la evolución han establecido una asociación funcional.
Para tal efecto se ha desarrollado un modelo 3D a escala atómica de la subunidad ß1, por medio de un método in silico conocido como modelaje molecular por homología.
Esto consiste en: a) identificar una proteína estrechamente relacionada por evolución divergente de una proteína ancestral común con la proteína blanco a modelar, la cual haya sido determinada experimentalmente (molde). b) alinear ambas secuencias para c) mutar computacionalmente cada aminoácido de la proteína blanco en el lugar correspondiente de la estructura resuelta experimentalmente.
Por último, el modelo se refina y evalúa de acuerdo a las leyes fisicoquímicas que determinan la geometría molecular. Una vez que se cuenta con información estructural confiable sobre el canal, con principios fisicoquímicos y resultados experimentales publicados, se establecen hipótesis sobre las posibles interacciones moleculares y cambios conformacionales que se llevan a cabo durante el mecanismo de compuerta del canal.
Aunque existen otros métodos indirectos para medir la actividad del canal (como los ensayos de unión, de flujo iónico, las sondas fluorescentes, entre otros), el estándar de oro para estudiar la actividad y farmacología de un canal son los registros electrofisiológicos, [10] los cuales miden en tiempo real la actividad del canal en función de la corriente eléctrica macroscópica (producto de la actividad de una población de canales) que se genera al variar experimentalmente el voltaje a través del tiempo.
Mediante diferentes protocolos de estimulación y en diversos tipos de preparaciones se obtienen parámetros estadísticos que describen la cinética del canal, sus tiempos y voltajes de activación, inactivación y recuperación.
Dicha información retroalimenta los modelos moleculares 3D a partir de los cuales se formulan nuevas hipótesis cualitativas sobre el comportamiento de los átomos del canal, causa última subyacente a los fenómenos macroscópicos observables.
Los modelos constituyen “hipótesis atómicas tridimensionales” asociadas a información experimental y cuyo comportamiento y evolución depende de aproximaciones estadísticas de las leyes fisicoquímicas de la naturaleza en un ambiente virtual en el cual se puede explorar una infinidad de posibilidades.
Por lo tanto, estos modelos a su vez contribuyen a dar una explicación coherente a los resultados empíricos y guían el diseño de nuevos experimentos que puedan contestar preguntas de relevancia fisiológica e importancia médica. Incluso bajo el espíritu newtoniano de un universo mecánico, resultaría terriblemente reduccionista e ingenuo dar a esta etérea imagen de canales iónicos, por elaborada y metódica que haya sido su creación, la calidad de causa última de un fenómeno biológico.
Pero bien es cierto que la delicada y extraordinaria comunicación celular que garantiza la vida de toda especie sobre la Tierra depende de un lenguaje que, en esencia, es una oscilación coordinada de cargas eléctricas, lejana al equilibrio termodinámico y fuertemente determinada por la estructura atómica de los canales por los cuales fluyen.
Este es, al menos, un mejor modelo sobre la manera en la cual las células, las unidades fundamentales de la vida, transmiten información e interactúan coordinadamente entre sí para conformar el conjunto de ultraestructuras funcionales que constituyen los organismos. Un modelo falible y limitado al fin.
Sin embargo, en palabras del físico americano Henry A. Bent: “Un modelo debe ser erróneo hasta cierto grado, si no sería la cosa misma que representa. El truco está en ver en qué es correcto”.[11]
REFERENCIAS
1 L'Univers, disait-t-il un jour, est un ensemble dissymétrique. Je suis porté à croire que la vie, telle qu'elle se manifeste à nous, doit être fonction de la dissymétrie de l'Univers ou des conséquences qu'elle entraîne. Works 1, Comptes Rendus de l'Académie des Sciences (1874).
2 Goldbetter A. Biological Rythms as Temporal Dissipative Structures. Special Volume in Memory of Ilya Prigogine. Advances in Chemical Physics, 135. John Wiley & Sons, Inc (2007).
3 Catterall WA. From ionic currents to molecular mechanism: the structure and function of voltage-gated sodium channels. Neuron, 26 (2000) 13-25.
4 Brackenbury WJ and Isom LL. Voltage-gated Na+ channels: Potential for ß subunits as therapeutic targets. Expert Opinion on Therapeutic Targets 12 (2008) 1191-1203.
5 Clare J J. Targeting ion channels for drug discovery. Discovery Medicine 53 (2010).
6 Overington JP, Al-Lazikani B and Hopkins AL. How many drug targets are there? Nat Rev Drug Discov 5 (2006) 993-996.
7 Ekins S, Mestres J and Testa B. In silico pharmacology for drug discovery: applications to targets and beyond. Br J Pharmacol. 152 (2007) 21-37.
8 Takahashi MP and Cannon SC. Enhanced Slow Inactivation by v445m: A Sodium Channel Mutation Associated with Myotonia. Biophysical Journal 76 (1999) 861-868.
9 Lampert A, O'Reilly AO, Reeh P and Leffler A. Sodium channelopathies and pain. Pflugers Arch. 460 (2010) 249-63.
10 Zheng W and Kiss L. Screening Technologies for Ion Channel Targets in Drug Discovery. American Pharmaceutical Review, Ion Channels.
11 Höltje et al. Molecular Modeling: Basic Principles and Applications. Wiley vch, Weinheim, Germany (2003).
angelislas@gmail.com
Eduardo Salinas Stefanon
esalinass@gmail.com
Instituto de Fisiología BUAP Puebla, México.
jueves, 27 de octubre de 2011
Microscopía electrónica. La intimidad de un mundo inimaginable

JOSÉ L. HERNÁNDEZ RIVERA, JOSÉ DE J. CRUZ RIVERA, ROBERTO MARTÍNEZ SÁNCHEZ Y VICENTE GARIBAY FEBLES
Inicio
Siempre ha sido objeto de curiosidad humana el tratar de observar objetos de tamaño pequeño, más allá del sentido de la vista, para lo cual se ha recurrido a diferentes medios que amplifican el tamaño de objetos como los anteojos que algunos usamos de manera normal: lupas, telescopios o microscopios, que nos permiten descubrir la naturaleza y las formas externas o internas de objetos que los ojos no son capaces de distinguir.
Hoy en día, además de los microscopios ópticos –utilizados desde hace ya varios siglos–, los microscopios electrónicos han tenido un gran auge en cuanto a aplicaciones en la ciencia moderna, pero ¿cuál es la principal diferencia entre ambos instrumentos?
Bien, el microscopio óptico utiliza como medio de radiación la luz visible y, además, usa lentes de vidrio para formar la imagen que se desea ver; mientras que el microscopio electrónico utiliza una fuente de electrones y las lentes con que cuenta son electromagnéticas para brindar máxima resolución.
 |
| Fig.1 Clic en imagen para ampliar |
Ahora bien, ¿cuáles son las implicaciones de usar uno u otro tipo de radiación? La respuesta es sencilla: la máxima resolución que se puede alcanzar. Resolución es la distancia mínima de separación que puede observarse de manera nítida entre dos objetos o detalles. A inicios de 1900, John Rayleigh descubrió que la resolución teórica de un microscopio es mayor cuando la longitud de onda de la radiación se disminuye; por tanto, si la longitud de onda de los electrones empleados en los microscopios electrónicos (.0020 nanómetros) es mucho menor que la de los fotones de luz visible (400 nanómetros en promedio), que emplea un microscopio óptico (figura 1), entonces la resolución del primero es mucho más alta que la del segundo, logrando que hoy en día se pueda ver objetos de tamaños que están por debajo de un nanómetro.
 |
| Tabla 1 Clic en imagen para ampliar |
A modo de resumen, en la (tabla 1) se enuncian las principales diferencias del microscopio óptico, del MEB (Microscopio Electrónico de Barrido) y del MET (Microscopio Electrónico de Transmisión).
 La ciencia forense es una de las disciplinas que incluyen análisis microscópicos de evidencias criminalísticas tales como residuos de armas de fuego, fibras de ropa, cabellos, uñas, etc., para poder resolver casos en los que sólo estas pistas han quedado en la escena del crimen. Por ejemplo en el caso del cabello, a través de esta herramienta es posible describir varias características, entre ellas: el lugar de donde proviene, si fue desprendido o se rompió, la edad y sexo de la persona y, además, si procede de un ser muerto o vivo (figura 2).

La adquisición de imágenes mediante un MEB también es aplicada en la minería, en la cual es aprovechada para analizar muestras de yacimientos en cuanto a tamaño, forma y composición de las partículas que se muestrean, y sirven, por un lado, para maximizar la recuperación de los metales puros a partir de minerales y, por otro, para guiar decisiones en lo relativo a conveniencia de elección de nuevas zonas de explotación y refinamiento de minerales.
Los equipos de MEB posibilitan observaciones de cualquier tipo de material, incluso, de líquidos o muestras orgánicas, que anteriormente no era posible, porque éstas no conducían corriente eléctrica.

|
| Fig. 4: Aspectos morfológicos de una araña mediante MEB |
Así mismo, el MEB permite conocer las transformaciones que previamente han ocurrido en un mineral y las probables condiciones bajo las cuales éstas se llevaron a cabo (figura 3). Finalmente, en la biología también se hace uso extensivo del MEB para la caracterización de especies de microorganismos, insectos, hongos… (figura 4).
Miscroscopio Electrónico de Transmisión (MET)
 A pesar de que las imágenes del MET no son tan descriptivas a simple vista como las de MEB, la capacidad del microscopio de transmisión es mayor en cuanto a información de nivel atómico. Esta técnica se ha utilizado en biología y medicina para determinar la estructura de moléculas y de organismos muy pequeños. De esta manera, las funciones biológicas de estos organismos pueden ser estudiadas a nivel atómico, describiendo, por ejemplo, algunos residuos de aminoácidos muy difíciles de identificar mediante otras técnicas (figura 5). Otro aspecto importante que ha sido posible detallar es la identificación de ciertos arreglos cristalinos que los virus o macromoléculas poseen, los cuales son muy similares a los que tienen los metales. De igual manera, gracias al MET, rasgos como la actividad, funciones, propiedades y organización de muchas células han podido ser descubiertos.
La acción desarrollada entre los nuevos sistemas de liberación de fármacos mediante la utilización de nanopartículas también ha sido un área de aplicación muy activa para el MET. La importancia tecnológica de usar nanopartículas radica en lograr una alta estabilidad de las mismas durante su movimiento, mayor capacidad de transporte del fármaco, más flexibilidad tanto para incorporar sustancias de cualquier naturaleza como para proveer de un número mayor de rutas de suministro y, finamente, la alta capacidad de controlar cuidadosamente la cantidad de fármaco que debe liberarse dentro del cuerpo humano.
Otra área de aplicación para el MET es, por excelencia, la ciencia de los materiales. Mediante esta técnica, es posible conocer una cantidad extremadamente alta de información acerca de muchos aspectos que normalmente no son evidenciados por el MEB o por otras técnicas; tamaño nanométrico de granos, forma geométrica de fases nuevas, tipo de estructura cristalina, nivel de deformación en el material, cantidad de defectos en la estructura cristalina, evaluación de transformaciones de fase…, son sólo parte de la información que se puede obtener.
Nuevos equipos y técnicas
 |
| Microscopio Electrónico de Barrido |
Las tendencias actuales son muchas y continuamente surgen más, pero sólo se incluyen las más relevantes, debido al espacio de esta publicación. En el caso del MEB, hoy en día se han desarrollado equipos a los que se ha incorporado un segundo cañón, del cual se desprenden no electrones, sino iones que, gracias a su mayor energía, son utilizados para realizar cortes y grabados de tamaños nanométricos. Una de las grandes capacidades de estos equipos, llamados de doble haz, es la preparación rápida de muestras para estudiarlas en un MET, evitando así los complejos y tardados métodos tradicionales de preparación. El espesor de las muestras obtenidas por esta técnica es muy uniforme y puede ser tan pequeño como el mismo material lo permita (figura 6).

Otro importante desarrollo de los equipos del MEB es que actualmente es posible efectuar observaciones de cualquier tipo de material, incluso, de líquidos o muestras orgánicas, lo cual hace algunos años era imposible, debido a que como estas muestras no conducían corriente eléctrica, el haz de electrones las destruía cuando se intentaba verlas.
Los microscopios de este tipo son conocidos como de tipo ambiental, de bajo vacío o de presión variable, y su funcionamiento se basa, principalmente, en que las moléculas de un gas son ionizadas en un área próxima a la muestra, por lo tanto, los iones positivos del gas creados por este modo son atraídos por la carga negativa que se acumula en la superficie de las muestras no conductoras, contrarrestando de esta manera los efectos de carga estática, y permitiendo así que se puedan realizar observaciones sin problema alguno.
En el caso del MET, una de las tendencias actuales es realizar estudios de alta resolución para poder observar y reconstruir el arreglo de estructuras cristalinas y defectos internos de los materiales, y de este modo, explicar las propiedades que el material en cuestión posee. Los contrastes observados en las imágenes obtenidas mediante esta técnica, son causados por la alteración que los átomos de la muestra provocan en la fase de las ondas del haz incidente, contraste que ha sido llamado contraste por fase. Este modo de formación de imagen se puede comparar con las ondas generadas en un río cuando se lanza una piedra, un extremo del contraste seria la línea que se está propagando (tono negro) y el otro extremo del contraste equivaldría a la mitad de la separación entre dos de estas líneas (tono claro). Con este tipo de imágenes se puede saber el nivel de pureza de un material, o medir la distancia existente entre las posiciones de los átomos e, incluso, saber si hay átomos ausentes en los lugares donde deberían estar.
Lograr este tipo de imágenes ha sido posible gracias a que los nuevos MET incorporan dispositivos electromagnéticos conocidos como correctores de astigmatismo, los cuales minimizan algunos defectos electromagnéticos que comúnmente no permiten la resolución ideal.

En las figuras 7A y B se puede apreciar este tipo de imágenes obtenidas como resultado de una colaboración conjunta entre el Centro de Investigación en Materiales Avanzados (CIMAV), la Universidad Autónoma de San Luis Potosí y el Instituto Mexicano del Petróleo, cuya finalidad es desarrollar materiales compuestos, tratando de dispersar, de manera homogénea, refuerzos como grafito y óxido de aluminio en el interior de materiales metálicos de bajo peso como el aluminio, todo esto para incrementar las propiedades mecánicas y para estudiar los efectos que ocurren en la microestructura de este tipo de materiales cuando son procesados específicamente a partir de polvos.
Currículum
José Luis Hernández Rivera es estudiante de posgrado en el programa de Doctorado en Ciencia e Ingeniería de Materiales del Centro de Investigación en Materiales Avanzados y, actualmente, realiza una estancia de investigación en el Centro de Microscopia Electrónica del Instituto Max Planck de Investigación en Materiales, en Stuttgart, Alemania.
José de Jesús Cruz Rivera es doctor en Metalurgia por el Instituto Politécnico Nacional, México. En el presente es investigador de tiempo completo y jefe del Área de Materiales, en el Instituto de Metalurgia de la Universidad Autónoma de San Luis Potosí.
Roberto Martínez Sánchez es doctor en Metalurgia por el Instituto Politécnico Nacional, México. Actualmente es jefe del Departamento de Física de Materiales en el Centro de Investigación en Materiales Avanzados (CIMAV), en la ciudad de Chihuahua.
Vicente Garibay Febles es doctor en Metalurgia por el Instituto Politécnico Nacional, México. En la actualidad, es jefe del Laboratorio de Microscopia Electrónica de Ultra Alta Resolución, del Instituto Mexicano del Petróleo, en México D. F.
Referencias
1. D. B. Williams y C. B. Carter. Transmission Electron Microscopy: A Textbook for Materials Science. S/cd.Plenum Press, 1994, 3-16, 85-104.
2. D. B. Williams et al. Acta mater., 48, (2000): 323-346.
3. J. Ayache et al. Sample Preparation Handbook for Transmission Electron Microscope. S/cd.: Springer, 2010.
4. C. Soderman. Métodos modernos de la . S/cd.: Limusa, 1992, 17-40.
5. R. Alani et al. Specimen Preparation for Transmission Electron Microscopy of Materials, IV. Mater. Res. Soc. Symp. Proc., vol. 480, (1997): 263.
6. José L. Hernández Rivera. “Caracterización microstructural y mecánica de materiales nanocompuestos con matriz de aluminio y reforzados con grafito u óxido de aluminio”, Tesis de Doctorado en Desarrollo, CIMAV-UASLP, 2011.
¿Microbios de 10 cm?
 |
| skepticwonder.fieldofscience.com |
Muy Interesante / 26/10/11
Durante un viaje en julio pasado a la fosa de las Marianas, la región más profunda del planeta, en el océano Pacífico, científicos del Instituto de Oceanografía Scripps e ingenieros de National Geographic hicieron descender cámaras robotizadas equipadas con video digital y luces a más de 10 kilómetros bajo las aguas (la máxima profundidad de las Marianas es de 11,034 metros).
En esta región casi inexplorada, de total oscuridad, muy bajas temperaturas y elevada presión, el equipo documentó, además de misteriosas medusas, la existencia de Xenophyophorea, una clase de animales unicelulares, parecidos a las amebas y que sólo viven a grandes profundidades. Son muy abundantes en los fondos marinos, pero nunca se les había encontrado a más de 7,000 metros de profundidad. Las que los investigadores lograron filmar estaban a 10,641 metros.
Las Xenophyophorea son las células individuales más grandes que existen; algunas rebasan los 10 centímetros y pueden dar cobijo a un gran número de criaturas pluricelulares. Es difícil traerlas a la superficie sin que se dañen y queden inutilizadas para su estudio, por lo que se sabe poco de ellas; sin embargo, científicos que han analizado partículas del fondo marino han encontrado que estas criaturas son capaces de concentrar en su organismo altos niveles de plomo, uranio, mercurio y metales pesados.
Encontrar a estas células gigantes en tales profundidades abre un nuevo ecosistema para el estudio de la biodiversidad, el potencial biotecnológico y la adaptación a los ambientes extremos, de lo que poco se sabe.
 |
| wikipedia.org |

¿Por qué incluyen esta nota en un blog para QFB's?
¿Qué tiene que ver?
¿Qué tiene que ver?
Los químicos farmacobiólogos, por lo general, estamos a costumbrados a lidiar con microorganismos, sean patógenos o no, se usen en la industria de los alimentos, en áreas agronómicas o como productores de sustancias por medio de la biotecnología, por mencionar algunos ejemplos. Por lo tanto, la finalidad de publicar esta noticia no es otra que la de la curiosidad científica, y la de llamar a la reflexión, pues como se menciono antes, estamos acostumbrados a los microbios, seres invisibles a simple vista, y el hecho de saber que existen algunos de más de 10 cm y poderlos ver en video, ¡es sorprendente!
Dedicado a todos los QFB's que aun mantienen esa curiosidad de niño, y que aún conservan esa maravillosa capacidad de asombro.
martes, 25 de octubre de 2011
Las ribozimas, moléculas terapéuticas en experimentación
Guillermo Aquino Jarquin
El dogma central de la biología molecular y el conocimiento de los flujos de información genética, desde el ADN hasta las proteínas, planteó el gran dilema de quién fue primero: ¿el huevo o la gallina? O lo que es lo mismo, ¿el ADN o las proteínas?
En un principio, no era posible pensar en un mundo de ácido desoxirribonucleico (ADN) sin proteínas, así como tampoco imaginar proteínas sin ADN; de modo que la respuesta al problema se encontraba en el ácido ribonucleico (ARN); es decir, el ADN contiene el código genético de las células, mientras que el ARN copia este código y lo pasa a las proteínas (enzimas) que, a su vez, son responsables de las reacciones celulares. Pero este ARN –particularmente, el ARN mensajero (ARNm)– debe sufrir algunas modificaciones antes de ser utilizado como molécula informativa para construir las proteínas.
La respuesta a una gran disyuntiva
 |
| Fig.1 Clic en la imagen para ampliar |
La razón es que el ADN contiene unas regiones llamadasintrones –que no contienen información para construir las proteínas–, las cuales están intercaladas en los fragmentos que contienen la información necesaria (exones). Durante el proceso de maduración de los ARNm, los intrones son cortados, además de ser eliminados y los exones se vuelven a unir hasta conformar una molécula con sentido; es decir, una secuencia de ARN capaz de generar una proteína funcional. Como cualquier reacción que tiene lugar en la célula, este proceso de maduración de las moléculas de ARN requiere la acción de las enzimas. Pero, en 1982, cuando Thomas Robert Cech, bioquímico y biólogo molecular estadounidense, estaba estudiando el proceso de maduración de un ARN en un organismo unicelular llamado Tetrahymena thermophila, descubrió –con sorpresa– que cuando colocaba una molécula de ARN mensajero no procesada en un tubo de ensayo, en ausencia de enzimas y de energia adicional, ésta era capaz de comenzar su proceso de maduración. Cech llegó a la conclusión de que el ARN se podía autoprocesar y se comportaba como una enzima, pues había catalizado la reacción por sí mismo (figura 1). Esta forma de un ARN con función enzimática fue denominada por Cech: ribozima.
Los descubrimientos de este investigador causaron escepticismo, puesto que él no consideraba uno de los principios de la biología molecular, según el cual sólo las enzimas actúan como catalizadores en las reacciones, con lo cual estaba cambiando el dogma de que todas las enzimas eran proteínas.
 |
| Fig.2 Clic en la imagen para ampliar |
Cuando en 1983, el químico estadounidense de origen canadiense, Sidney Altman anunció unos descubrimientos similares, los científicos se dieron cuenta de que el ARN podía actuar como una enzima, además de mantener su papel como molécula necesaria para la formación de proteínas. Sin duda, el hallazgo de las ribozimas fortaleció la hipótesis del mundo de ARN que intenta descifrar el misterio del origen de la vida, lo que ha conducido a la idea de que esta génesis pudo deberse a la aparición de moléculas de ARN, del tipo ribozimas, capaces de contener la información genética y al mismo tiempo de actuar como catalizadoras, una –facultad, hasta entonces, considerada propia de las proteínas–. De esta manera, el mundo del ARN ofrece la respuesta a la gran disyuntiva de el huevo o la gallina, definiendo que una simple molécula no sólo es un depósito estático de la información genética, sino además funciona como un catalizador, que a su vez codifica para los catalizadores más modernos: las proteínas, las cuales pudieron haber evolucionado después. Actualmente, además de esta actividad de auto-corte, se ha observado algo muy interesante: que las ribozimas pueden reconocer otros ARN y cortarlos de forma específica (figura 2).
La importancia de las ribozimas
 |
| Fig.3 Clic en la imagen para ampliar |
Desde el descubrimiento de las primeras moléculas de ARN con actividad catalítica, aparecieron en la naturaleza diversos procesos catalizados por los ARN, particularmente en virus, bacterias y plantas. Hoy en día se conocen al menos siete ribozimas naturales. Los ARN catalíticos más pequeños como las ribozimas cabeza de martillo (hammerhead) y la ribozima de tipo pasador (hairpin) son los más estudiados (figura 3). El reconocimiento de las ribozimas por su ARN blanco (aquel que se desea procesar) se da mediante interacciones específicas entre las bases nitrogenadas (A,G,C,T) de la ribozima y el blanco. El corte se realiza en los grupos fosfatos. En el ARN, los grupos fosfato son aquellos que conectan una ribosa (el azúcar presente en el ARN) con otra, de manera que al romper estos enlaces se interrumpen las largas cadenas que constituyen la estructura del ARN.
El potencial terapéutico de la ribozimas
 |
| Fig.4 Clic en la imagen para ampliar |
Debido a su capacidad de corte, estas enzimas de ARN se consideran como buenos candidatos para el desarrollo de nuevas alternativas terapéuticas, útiles para el tratamiento de enfermedades contra las cuales en la actualidad no se cuenta con una terapia eficaz, lo que incluye enfermedades tanto de origen viral como genético. Para ello, una de las estrategias para conseguir la desactivación específica de la expresión génica más atractiva –un proceso altamente específico en el cual un gen se enciende en un momento determinado y comienza la producción de su proteína– se realiza mediante el empleo de ácidos nucleicos catalíticos, como las ribozimas (figura 4). El uso de ribozimas como agentes terapéuticos, tiene una ventaja añadida y es que, a diferencia de otros fármacos sumamente agresivos y carentes de especificidad celular, las ribozimas tienen una gran especificidad porque se unen sólo a la secuencia de ARN sobre la cual se dirigen, sin la posibilidad de alterar otros blancos celulares. Con base en esto, actualmente se usan ribozimas para cortar especialmente diversos ARN; con lo cual se logra, por ejemplo:
- Evitar la entrada del Virus de Inmunodeficiencia Humana tipo I (VIH-I) a las células inmunitarias.
- Bloquear la infección por virus de hepatitis B y de hepatitis C.
- Tratar cánceres de mama y colorrectal.
La aplicación de ribozimas pequeñas como la ribozima hairpin, ha tenido considerable interés para la terapia génica, la cual ha sido utilizada como poderosa herramienta para el apagado de genes.*
En el Laboratorio de Terapia Génica, dirigido por el Doctor Luis Marat Alvarez Salas, del Departamento de Genética y Biología Molecular, del Centro de Investigación y de Estudios Avanzados (CINVESTAV), estamos utilizando este tipo de ribozimas como modelo para el desarrollo de ARN terapéuticos contra el cáncer cervical, el tipo de cáncer más común en mujeres mexicanas y que es responsable de la muerte de 12 mujeres diariamente. Una de las aproximaciones experimentales que hemos seguido ha sido la construcción de una ribozima hairpin R434 (figura 3) en un ambiente artificial (in vitro), que causa la destrucción del ARNm de los genes E6 y E7, del Virus del Papiloma Humano tipo 16 (VPH-16), el principal agente causante del cáncer cervico-uterino que, además, impide tanto el crecimiento de las células inmortalizadas (células que crecen indefinidamente) en presencia de este virus, como el crecimiento de tumores cervicales. Esta tecnología ha sido patentada en colaboración con el Dr. Joseph A. DiPaolo del Instituto Nacional de Salud (NIH), de los Estados Unidos, y se espera su evaluación en el ámbito clínico en nuestro país.
Lo anterior ha sido desarrollado como una estrategia adicional para el tratamiento de esta patología. A pesar de que existe una vacuna comercial contra el VPH-16, su distribución y aplicación en mujeres mexicanas se ve muy lejana, principalmente por el alto costo de la vacuna. Por otro lado, su efectividad radica en la prevención de la infección por el VPH-16 y no en el tratamiento del cáncer cervico-uterino; se trata de una vacuna preventiva y no curativa.
Es indiscutible que, en esta etapa, el compromiso de nuestro equipo de trabajo es consolidar el sistema de tratamiento, mediante el impulso de nuestras investigaciones a escala molecular, con especial énfasis en las ribozimas hairpin, ya que éstas han sido ampliamente estudiadas y se conoce su uso potencial en la terapia génica, al igual que su papel como herramienta terapéutica para este tipo de cáncer en particular.
* La terapia génica es un procedimiento que implica reemplazar, manipular o suplementar los genes no funcionales con genes que sí funcionan, para poder tratar así enfermedades.
Guillermo Aquino Jarquin es biólogo experimental por la Universidad Autónoma Metropolitana, unidad Iztapalapa y maestro en genética y biología molecular por el CINVESTAV, donde está por obtener el doctorado en ciencias. Actualmente, labora en el Laboratorio de Terapia Génica del Departamento de Genética y Biología Molecular, abocado a la evaluación del potencial de las ribozimas como un ácido nucleico terapéutico contra el cáncer cervicouterino.
Referencias
1. Cech T. R. “The chemistry of self-splicing RNA and RNA enzymes”. Science (1987), Jun 19;236 (4808):1532-9.
2. Alvarez Salas L. M. et.al. “Inhibition of HPV-16 E6/E7 immortalization of normal keratinocytes by hairpin ribozymes”. Proc. Natl. Acad. Sci. U S A. 1998 Feb 3;95(3):1189-94.
3. Barroso del Jesús, A. y Berzal-Herranz, A. “En busca de nuevos agentes antivirales: Ribozimas y estrategias de aplicación”. (2001), Virología, 8: 47-67.
domingo, 9 de octubre de 2011
Compuestos tóxicos generados durante el procesamiento de alimentos
 Lo compuestos que se generan por un proceso son parte intrínseca de la transformación de los alimentos; es posible tener una idea de su presencia, pero no siempre se les cuantifica o se prevé su repercusión, sin embargo, en muchos casos se puede controlar su formación o fijar tolerancias que garanticen la salud del consumidor.
Entre los carcinógenos secundarios más importantes se encuentran:
1. Uretano o carbamato de etilo (CH3-CH2-O-CO-NH2). Es un compuesto que por lo general se encuentra en los alimentos cuando se usa el pirocarbonato de dietilo* como conservador, puesto que la degradación de este genera al uretano. Se encuentra en muchos alimentos fermentados, como en los derivados lácteos, la cerveza, el vino y el pan; su administración en las ratas les provoca tumores.
2. Aflatoxinas. Como la aflatoxina (B1) hallada en cacahuates y granos (cereales).
3. Hidracinas. Son una familia de compuestos, todos encontrados en diversos hongos comestibles (Gyromitra esculenta, Agaricus bisporus y Cortinellus shiitake**); muchos de ellos han demostrado su capacidad mutagénica y carcinogénica en distintos animales de laboratorio; atacan principalmente el estómago y los pulmones con diferentes velocidades.
4. Isotiocianatos. Los isotiocianatos, principalmente el de alilo son responsables del aroma característico de un gran número de productos vegetales, tales como rábano, mostaza, brócoli, col y otros. En pruebas de laboratorio se ha demostrado que el consumo excesivo del isotiocianato de alilo causa cáncer en las ratas; por otro lado, este compuesto forma parte del aroma y sabor de la cebolla y el ajo.
5. Alcaloides de la pirrolizidina. Se sabe que algunos derivados de la pirrolizidina tienen la capacidad de ser mutagénicos, carcinogénicos y teratogénicos, y que se encuentran en gran número de plantas, principalmente en las que se emplean para hacer infusiones. Entre las pirrolizidinas más comúnes están la petasitenina, la senquirquina y la simfitina que, cuando se administran en forma pura a las ratas, provocan tumores en el hígado.
6. Café. Según el método de preparación, se extraen diferentes compuestos, tales como cafeína, diacetilo, glioxal, metil-glioxal, ácido clorogénico y otros. Estas sustancias han demostrado ser mutagénicas. También contiene pequeñas cantidades de benzopireno, cuya mutagenicidad y carcinogenicidad ya ha sido comprobada; los taninos también están presentes.
7. Reacciones de Maillard. Son un grupo de transformaciones que dan origen a los colores y algunos sabores típicos de muchos alimentos (p. ej., pan, huevo, leche), cuando se someten a tratamiento térmico; de acuerdo con la intensidad, la coloración varía desde amarillo ligero hasta un café intenso. En relación con su posible toxicidad existe mucha controversia. Las reacciones de Maillard se llevan a cabo entre los grupos reductores de azúcares y los grupos amino libres de las proteínas o aminoácidos, que dan lugar a una seria de pigmentos oscuros conocidos como las melanoidinas.
Mientras se lleva a cabo la reacción de Maillard, se observa que también disminuye la digestibilidad de las proteínas, así como también la cantidad de lisina disponible. Con dietas elevadas en compuestos tipo Maillard, se observan diarreas agudas, problemas intestinales (cecum inflamado), elevada excreción de aminoácidos y un decremento considerable en la actividad enzimática de lactasa, sacarasa y maltasa. También se ha asociado el daño hígado con compuestos de tipo Maillard, ya que está relacionado con el aumento de actividad de fosfatasa alcalina y de la transferasa de oxalato-glutamato. Incluso se ha demostrado que este tipo de pigmentos son mutagénicos en la prueba de Ames.
2. Aflatoxinas. Como la aflatoxina (B1) hallada en cacahuates y granos (cereales).
3. Hidracinas. Son una familia de compuestos, todos encontrados en diversos hongos comestibles (Gyromitra esculenta, Agaricus bisporus y Cortinellus shiitake**); muchos de ellos han demostrado su capacidad mutagénica y carcinogénica en distintos animales de laboratorio; atacan principalmente el estómago y los pulmones con diferentes velocidades.
4. Isotiocianatos. Los isotiocianatos, principalmente el de alilo son responsables del aroma característico de un gran número de productos vegetales, tales como rábano, mostaza, brócoli, col y otros. En pruebas de laboratorio se ha demostrado que el consumo excesivo del isotiocianato de alilo causa cáncer en las ratas; por otro lado, este compuesto forma parte del aroma y sabor de la cebolla y el ajo.
5. Alcaloides de la pirrolizidina. Se sabe que algunos derivados de la pirrolizidina tienen la capacidad de ser mutagénicos, carcinogénicos y teratogénicos, y que se encuentran en gran número de plantas, principalmente en las que se emplean para hacer infusiones. Entre las pirrolizidinas más comúnes están la petasitenina, la senquirquina y la simfitina que, cuando se administran en forma pura a las ratas, provocan tumores en el hígado.
6. Café. Según el método de preparación, se extraen diferentes compuestos, tales como cafeína, diacetilo, glioxal, metil-glioxal, ácido clorogénico y otros. Estas sustancias han demostrado ser mutagénicas. También contiene pequeñas cantidades de benzopireno, cuya mutagenicidad y carcinogenicidad ya ha sido comprobada; los taninos también están presentes.
7. Reacciones de Maillard. Son un grupo de transformaciones que dan origen a los colores y algunos sabores típicos de muchos alimentos (p. ej., pan, huevo, leche), cuando se someten a tratamiento térmico; de acuerdo con la intensidad, la coloración varía desde amarillo ligero hasta un café intenso. En relación con su posible toxicidad existe mucha controversia. Las reacciones de Maillard se llevan a cabo entre los grupos reductores de azúcares y los grupos amino libres de las proteínas o aminoácidos, que dan lugar a una seria de pigmentos oscuros conocidos como las melanoidinas.
Mientras se lleva a cabo la reacción de Maillard, se observa que también disminuye la digestibilidad de las proteínas, así como también la cantidad de lisina disponible. Con dietas elevadas en compuestos tipo Maillard, se observan diarreas agudas, problemas intestinales (cecum inflamado), elevada excreción de aminoácidos y un decremento considerable en la actividad enzimática de lactasa, sacarasa y maltasa. También se ha asociado el daño hígado con compuestos de tipo Maillard, ya que está relacionado con el aumento de actividad de fosfatasa alcalina y de la transferasa de oxalato-glutamato. Incluso se ha demostrado que este tipo de pigmentos son mutagénicos en la prueba de Ames.
Fuente: Salvador Badui Dergal. Química de los alimentos. 4a ed. México DF 2006. Ed. Pearson, pp. 590, 591.
** Sinónimo Taxonómico: Lentinula edodes
Temas relacionados:
Temas relacionados:
- Hechos poco conocidos sobre las sustancias cancerígenas contenidas en los productos naturales. pdf
- Agentes tóxicos generados durante el procesamiento de alimentos. pdf
- Toxicology and Carcinogenic Action of Pyrrolizidine Alkaloids. pdf
NOTA. Recordemos que el cáncer es un proceso multifactorial, por lo cual es necesario que se presenten otras condiciones, además del consumo en exceso y prolongado de estos alimentos, para desarrollar la enfermedad.
Suscribirse a:
Entradas (Atom)